1. دلیل علمی زمان آبیاری(نه ظهر نه شب ) بلکه اول صبح قبل طلوع آفتاب
پتاسیم و کلسیم علیه بیماریهای گیاهی: فرمول مهندسی مقاومت سلولی
تغذیه گیاهی به هیچ عنوان صرفاً ابزاری برای رساندن گیاه به حداکثر تناژ نیست؛ خط اول پدافند بیوشیمیایی و بیوفیزیکی گیاه در برابر تهاجم پاتوژنها دقیقاً در محل آرایش کاتیونهای پتاسیم و کلسیم شکل میگیرد. زمانی که ریشهها کلسیم و پتاسیم را در تعادل فیزیولوژیک دقیق جذب میکنند، بافتهای محافظتی گیاه سدهای فیزیکی مستحکمی میسازند که آنزیمهای نفوذی قارچها و باکتریها را غیرفعال کرده و فضاهای بینسلولی را از منابع قندی آزاد خالی نگه میدارند. درک دقیق رابطه پتاسیم و کلسیم با بیماری های گیاهی این امکان را برای کارشناسان فراهم میکند که پیش از خرید سموم تماسی و سیستمیک گرانقیمت، ساختار درونی گیاه را به دژی تسخیرناپذیر در برابر عوامل بیماریزا تبدیل کنند.
داستان از این قرار است که پاتوژنهای گیاهی برای استقرار در بافت میزبان، نیاز به شکستن پوسته بیرونی و مکیدن ذخایر هیدرولیزشده دارند. هرگونه اختلال در فرآیند آهکیشدن دیواره یا افت بار اسمزی سیتوپلاسم، منافذ ورود بافتمردگیها و گندیدگیها را باز خواهد کرد. در مدیریت مدرن باغات و گلخانهها، بررسی این دو کاتیون نه به صورت ایزوله، بلکه به عنوان یک سیستم زوجی متقابل با نقشهای مکمل در دیواره و سیتوزول، تفاوت میان بقا یا خسارت اقتصادی محصول را رقم میزند.
مکانیسمهای بیوشیمیایی کلسیم؛ سد نفوذناپذیر ساختاری و مرکز فرماندهی ایمنی
در ارزیابی دیواره سلولی، کلسیم نقش ملات شیمیایی اصلی را ایفا میکند. این عنصر به عنوان یک کاتیون دو ظرفیتی، توانایی اتصال همزمان به دو گروه باردار منفی در ماتریس آپوپلاست را داراست. بافت گیاهی بدون ذخیره مکفی کلسیم ساختاری، پیشاپیش تسلیم ابزارهای تخریبی عوامل قارچی شده است.
پکتات کلسیم و فلج کردن آنزیمهای تجزیهکننده دیواره سلولی (CWDEs)
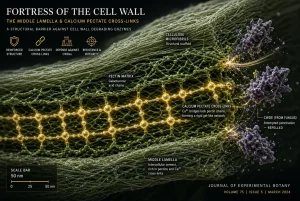
تیغه میانی (Middle Lamella) چسب بیولوژیکی است که سلولهای مجاور گیاهی را محکم کنار هم نگه میدارد. بخش عمده این ساختار از پلیمرهای اسید گالاکتورونیک تشکیل شده است. پیوندهای یونی میان یونهای کلسیم و گروههای کربوکسیل موجود در این زنجیرهها، ساختار پایداری تحت عنوان «پکتات کلسیم» را پایهریزی میکنند.
حالا ببینید قارچهای نکروتروفی مثل Botrytis cinerea یا باکتریهایی نظیر گونههای Pectobacterium دقیقاً چه رفتاری دارند: این عوامل بیماریزا با ترشح آنزیمهای تجزیهکننده پکتین، به ویژه اندوپلیگالاکتوروناز (Endopolygalacturonase) و پکتین لیاز، زنجیرههای اسید پکتیک را خرد کرده و بافت را لزج و مستعد تخریب میکنند. پکتات کلسیم یک سد مکانیکی پایدار در تیغه میانی است که مانع از تخریب بافت گیاه توسط آنزیمهای پکتولیتیک پاتوژنها میشود. هنگامی که بافتهای گیاهی از این ترکیب غنی باشند، جایگاههای فعال آنزیمهای پاتوژن مسدود شده و امکان لیز سلولی از بین میرود.
شار درونسلولی Ca2+: پیامرسان ثانویه در خط مقدم ایمنی ذاتی گیاه
فراتر از سدسازی فیزیکی، کلسیم کلید اصلی سیستم اخطار سریع سلول است. در حالت عادی، غلظت یون کلسیم آزاد در سیتوزول به شدت پایین نگه داشته میشود (در حدود ۱۰۰ نانومولار). به محض اینکه گیرندههای سطحی گیاه (PRRs) الگوهای مولکولی وابسته به پاتوژن (PAMPs) مانند کیتین قارچها یا فلاژلین باکتریها را حس کنند، کانالهای کلسیمی غشای سیتوپلاسمی در کسری از ثانیه باز میشوند.
ورود پرشتاب یونهای کلسیم به سیتوزول، کدهای فرکانسی تولید میکند. این زبان رمزگذاریشده توسط پروتئینهای حسگر کلسیم مانند کالمودولین (Calmodulin) و پروتئین کینازهای وابسته به کلسیم (CDPKs) خوانده میشود. پیامد این سیگنالدهی، فعالسازی انفجار تنفسی (تولید اکسیداتیو ROS)، بسته شدن مسیرهای پلاسمودسماتی به کمک رسوب کالوز و تحریک بیان ژنهای مقاومت و پروتئینهای مرتبط با بیماریزایی (PR Proteins) است. گیاهی که دچار فقر فیزیولوژیک کلسیم باشد، توانایی ارسال این هشدارهای زیستی را در مقیاس زمانی نانو از دست خواهد داد.
نقش فیزیولوژیک پتاسیم؛ گرسنگی دادن به پاتوژن و قفل کردن روزنهها
پتاسیم با شعاع هیدراتاسیون منحصربهفردش، موتور محرکه بیش از ۶۰ فرآیند آنزیمی است. این کاتیون تکظرفیتی مستقیماً در ساختار دیواره قرار نمیگیرد، اما زیربنای سوختوساز و هیدرولیک سلول را مدیریت میکند. کمبود پتاسیم در بافت گیاهی به سرعت اثرات منفی خود را در شیوع انواع بیماریهای گیاهی آشکار میسازد.
تنظیم تورژسانس سلولهای نگهبان روزنه؛ سد مکانیکی در برابر نفوذ اولیه
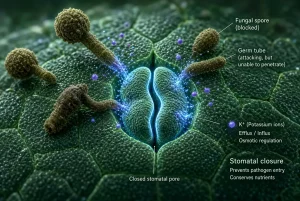
روزنههای هوایی اولین درگاه ورود پاتوژنهای باکتریایی نظیر Pseudomonas syringae و لولههای زایا اسپورهای قارچی هستند. بسته شدن روزنهها پس از شناسایی حمله، یکی از مکانیسمهای مهم موسوم به ایمنی باواسطه روزنه (Stomatal Immunity) به حساب میآید.
کنترل باز و بسته شدن روزنهها کاملاً وابسته به دینامیک یون پتاسیم در سلولهای نگهبان است. زمان تهاجم عامل بیماریزا، اسید آبسیزیک (ABA) مسیر خروج سریع K+ از طریق کانالهای خروجی مثل GORK را فعال میکند. با خروج سریع پتاسیم، پتانسیل آب سلول نگهبان بالا رفته، آب از سلول خارج میشود، تورژسانس افت کرده و منفذ روزنه بلافاصله بسته خواهد شد. اگر ذخیره پتاسیم در برگ کافی نباشد، سلولهای نگهبان روزنه پاسخ کُند و ناقصی نشان میدهند؛ در چنین شرایطی روزنهها ساعتها نیمهباز باقی میمانند و مسیر نفوذ آزاد برای بیمارگرها فراهم میشود.
متابولیسم کربن ونیتروژن: خشکاندن ذخایر غذایی آپوپلاست علیه نکروتروفها
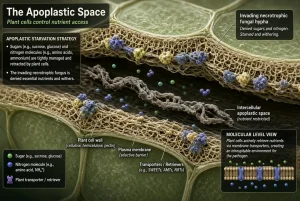
نکته جالب اینجاست که پاتوژنها برای تشکیل اولین کلونی به مواد قندی ساده و ترکیبات آمینی موجود در ترشحات بینسلولی (Apoplast exudates) متکی هستند. پتاسیم کاتالیزور اصلی فرآیند تبدیل مونوساکاریدها به نشاسته و اسیدهای آمینه آزاد به پروتئینهای با وزن مولکولی بالاست.
چنانچه پتاسیم کافی در دسترس بافت برگ نباشد، فرآیند سنتز پروتئین متوقف میشود؛ این رخداد تجمع شدید اسیدهای آمینه با وزن مولکولی کم (به ویژه گلوتامین و آسپاراژین) و قندهای احیاکننده در آپوپلاست را در پی دارد. این ترشحات شیرین و سرشار از نیتروژن، محیط کشت بینقصی برای تکثیر قارچهایی مانند Fusarium و Rhizoctonia مهیا میکنند. تأمین پتاسیم با هدایت سریع این مونومرها به ساختارهای پلیمری، فضای آپوپلاست را برای بیمارگر به یک برهوت تغذیهای تبدیل میکند.
دینامیک انتقال آوند چوبی و تفاوت در تحرک بافتی دو عنصر
تفاوت فاحش این دو کاتیون در فیزیولوژی انتقال، مدیریت آنها را حساستر میکند. پتاسیم عنصری فوقالعاده متحرک در هر دو سیستم آوندی آبکش و چوبی است. این عنصر به راحتی از برگهای پیر به سمت برگهای جوان و میوهها جابهجا میشود. کلسیم دقیقاً در نقطه مقابل قرار دارد؛ عنصری کمتحرک که تقریباً به صورت انحصاری در آوند چوبی و در جهت جریان تعریق (Transpiration Stream) حرکت میکند.
کلسیم پس از تثبیت در برگهای پیر، بازچرخانی نخواهد شد و به بافتهای در حال رشد یا میوهها نمیرسد. در شرایطی که میزان تبخیر بالا رفته یا رطوبت نسبی گلخانه به شدت افت کند، برگها جریان آب و کلسیم را میبلعند و میوهها محروم میمانند. در همین حین، پتاسیم مدام از طریق آوند آبکش به میوه پمپ میشود. ایجاد این عدم توازن موضعی، آسیبپذیری میوه در برابر نفوذ کپک خاکستری (Botrytis) را در دوره رسیدگی چند برابر افزایش میدهد.
رفتارشناسی بیماریها در برابر کلسیم و پتاسیم: بیوتروفها در برابر نکروتروفها
مهار کپکهای خاکستری و لکهبرگیها با مدیریت کلسیم
پاتوژنهای نکروتروف ابتدا بافت سلولی را به کمک ترشح سموم و آنزیمهای گوارشی هیدرولیز کرده و میکشند، سپس از جنازه این بافتها تغذیه میکنند. نمونه بارز آنها Sclerotinia و Botrytis هستند.
در این نبرد، کلسیم عنصر نجاتبخش است. افزایش غلظت کلسیم در بافت آپوپلاست، سد پیوندهای پکتاتی را در برابر لایز آنزیمی مقاوم کرده و تکثیر نکروتروفها را متوقف میکند. زمانی که محتوای کلسیم بافت اپیدرمی بالا باشد، ریسههای قارچ بوتریتیس توان حفر تونل به درون سلولها را نخواهند داشت. حتی اگر قارچ بتواند سطح بیرونی را خراش دهد، گیاه فرصت کافی برای سنتز دیواره ثانویه و ایزولهسازی کانون عفونت پیدا خواهد کرد.
استراتژی سرکوب زنگها و سفیدکها از طریق بهینهسازی پتاسیم
پاتوژنهای بیوتروف و همیبیوتروف رفتاری کاملاً متفاوت دارند؛ قارچهایی نظیر سفیدکهای پودری (Erysiphe) و زنگها (Puccinia) نیازمند میزبان زنده برای ادامه حیات خود هستند. آنها اندامهای مکنده به نام هاستوریوم (Haustorium) را بدون کشتن سلول، وارد فضای بین غشا و دیواره میکنند.
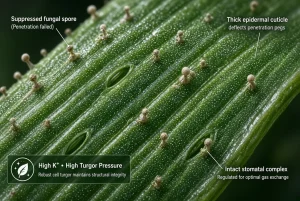
پتاسیم با ضخیمتر کردن کوتیکول و تقویت لایههای لیگنین در بافت اپیدرم، استقامت فیزیکی سلول را در برابر ورود میخ نفوذ هاستوریوم بالا میبرد. علاوه بر این، متابولیسم سالم در حضور مقادیر کافی پتاسیم، سطح فیتوالکسینها و ترکیبات فنلی ضدمیکروبی را در بافت گیاه ارتقا میدهد. فقر پتاسیم مستقیماً موجب شکنندگی دیواره سلولها شده و مقاومت القایی را در مواجهه با اسپور این دسته از قارچها به شدت مختل میکند.
تحلیل تقابلی اثرات بیوشیمیایی کلسیم و پتاسیم بر پاسخهای ایمنی گیاه
برای درک نظاممند رابطه کاتیونها با پاتوژنها، ویژگیهای بیوفیزیکی و عملکرد ایمنی این دو عنصر به تفکیک بررسی و با یکدیگر مقایسه شده است:
| شاخص متغیر | کلسیم (Ca2+) | پتاسیم (K+) |
|---|---|---|
| محل استقرار عملکردی در سلول | تیغه میانی، ماتریس آپوپلاست و پیوند با فسفولیپیدهای غشا | سیتوپلاسم، واکوئل و استرومای کلروپلاست |
| مکانیسم دفاعی غالب | تقویت ساختاری دیواره و سدسازی آنزیمی + پیامرسانی ثانویه | تنظیم هیدرودینامیک روزنهها + پیشگیری از نشت متابولیتهای محلول |
| دسته پاتوژنهای هدف تحت کنترل | پاتوژنهای نکروتروف و باکتریهای عامل پوسیدگی نرم | پاتوژنهای بیوتروف، لکهبرگیها و باکتریهای نفوذکننده از روزنه |
| پیامد کمبود بر حساسیت گیاه | مچاله شدن تیغه میانی، نشت الکترولیت و ریزش سریع بافت | باز ماندن غیرطبیعی روزنهها و تجمع قندهای احیاکننده در آپوپلاست |
| نشانگرهای بیوشیمیایی تحت کنترل | فعالیت آنزیمهای کالمودولین، اکسیداتیو برست (ROS) و پکتیناز | سرعت کاتالیزوری آنزیم پیرووات کیناز و میزان سنتز پروتئین |
پاسخ به پرسشهای چالشبرانگیز تخصصی
نفوذ پاتوژن نیازمند عبور از کوتیکول، دیواره سلولی اولیه و تخریب پیوندهای پکتینی میانسلولی است. کلسیم در اولین گام ساختاری، با کمپلکسشدن با پکتین اسیدی از طریق ساختار موسوم به «جعبه تخممرغ» (Egg-box model)، پیوندهای بسیار سخت پکتات کلسیم را تولید میکند. این پیوندها مقاومت شیمیایی دیواره در برابر اثر کاتالیزوری اندوپلیگالاکتورونازهای پاتوژن را تا ده برابر افزایش میدهند.
در مقابل، پتاسیم کاتالیزور آنزیمهای ترانسفراز مسئول سنتز سلولز و همیسلولز است. بدون پتاسیم کافی، شبکه میکروفیبریلهای سلولزی ضخامت لازم را پیدا نمیکنند. این دو کاتیون به صورت همافزا، ساختار دیواره را به سدی با سختی فیزیکی و مقاومت آنزیمی بالا تبدیل میکنند که تشکیل آپرسوریوم و پیشروی میخ نفوذ را ناممکن میسازد.
کانالهای جذبی در غشای پلاسمایی سلولهای ریشه (ریشهچهها) ظرفیت محدودی برای عبور یونها دارند. کلسیم از طریق کانالهای نفوذپذیر غشایی کاتیونی غیرانتخابی وارد میشود، در حالی که پتاسیم از طریق ناقلهای اختصاصی با میل ترکیبی بالا (مانند HAK/KUP) و کانالهای AKT1 با شدت زیاد جذب میگردد.
زمانی که غلظت K+ در محلول خاک به طور مصنوعی و افراطی افزایش مییابد، به دلیل پتانسیل هیدراتاسیون کمتر و سرعت تحرک بالاتر یون پتاسیم در مقایسه با یون سنگینتر و دوظرفیتی کلسیم، جایگاههای مبادلهای آپوپلاست ریشه توسط پتاسیم اشغال میشوند. این رخداد با ایجاد دپلاریزاسیون در غشا، تمایل ریشه برای جذب کلسیم را کاهش داده و موجب توقف موقت ورود کلسیم به آوند چوبی میشود. در چنین شرایطی، حتی اگر در خاک مقادیر بالایی از کلسیم وجود داشته باشد، گیاه به کمبود پنهان کلسیم دچار شده و در برابر عوامل نکروتروفیک آسیبپذیر میگردد.
پتاسیم تنظیمکننده بارهای الکتریکی درون سلول و محرک سنتز ماکرومولکولهاست. افت غلظت پتاسیم سبب کند شدن عملکرد آنزیم رونویسی و ترجمه و همچنین مهار آنزیم سنتتیک پلیساکاریدها میگردد. نتیجه مستقیم این رویداد، باقی ماندن گلوکز، فروکتوز و اسیدهای آمینه آزاد در سیتوزول و متعاقباً مهاجرت یا نشت آنها از طریق غشاهای نفوذپذیر به فضای آپوپلاست است.
علاوه بر این، در غیاب پتاسیم، پمپهای پروتونی (H+-ATPase) غشا نیز عملکرد صحیحی نخواهند داشت و pH آپوپلاست دستخوش نوسان میشود. با رهاسازی این مونومرها به فضای آپوپلاست، قارچهایی مانند Rhizoctonia solani بلافاصله سوبسترای غذایی غنی برای جوانه زدن اسپور و تکثیر هیفها در اختیار خواهند داشت؛ در حالی که حضور پتاسیم کافی این منابع غذایی را به پلیمرهای غیرقابل دسترس برای پاتوژن تبدیل میکند.
طی فرآیند شناسایی پاتوژن، غلظت کلسیم سیتوزولی از ۱۰۰ نانومولار به بیش از ۱۰۰۰ نانومولار در چند دقیقه میرسد. این افزایش سریع و نوسانی، فعالکننده پروتئینهای تنظیمی خاص به نام CPKها است. پروتئینهای CPK پس از اتصال با کلسیم، آنزیم NADPH اکسیداز مستقر در غشای پلاسمایی (RbohD) را فسفریله میکنند.
فسفوریلاسیون این آنزیم به تولید ناگهانی رادیکالهای سوپراکسید و پراکسید هیدروژن در آپوپلاست میانجامد که شوک اکسیداتیو کشندهای برای پاتوژنها ایجاد میکند. از سوی دیگر، همین کمپلکس سیگنالینگ مستقیماً آنزیم کالوز سنتتاز را وادار به تولید بتا-۱،۳-گلوکان (کالوز) میکند. رسوب کالوز پاپیلهای مستحکمی در زیر میخ نفوذ قارچ میسازد که مسیر مکانیکی عبور آن را مسدود مینماید.
برای جلوگیری از ضعف بافتی، باید پایش مداوم شیره گیاهی (Sap Analysis) و آزمون آب و خاک در دستور کار باشد. نسبت مولی پتاسیم به کلسیم در محلول غذایی برای گیاهان حساس به پوسیدگی میوه باید در حدود ۱:۱ تا ۱.۵:۱ در اوایل فاز رویشی نگه داشته شود و صرفاً در اواخر پر شدن میوه به ۲:۱ یا حداکثر ۲.۵:۱ برسد.
عبور این نسبت از ۳:۱ به خصوص در محصولات صیفی، بافت گیاه را در برابر نفوذ پاتوژنهای باکتریایی مستعد پوسیدگی حتمی خواهد کرد. ایجاد چنین تعادلی مستلزم این است که کاربرد کلسیم در فازهای تقسیم سلولی آغازین صورت گیرد و باردهی سنگین پتاسیم به فاز بزرگشدن سلولها و پس از تثبیت شبکه کلسیمی دیواره موکول شود.
پیادهسازی زراعی و راهنمای میدانی تنظیم پتاسیم و کلسیم
پیادهسازی موفق این اصول علمی در مزرعه و گلخانه، نیازمند تغییر در زمانبندی و شیوه مصرف کودهاست. بسیاری از خطاهای رایج با اصلاح رویکرد کاربرد این دو عنصر به راحتی قابل پیشگیری هستند.
با توجه به اینکه کلسیم از طریق آوند چوبی و با جریان تعریق حرکت میکند، مصرف آن باید دقیقاً در مراحل آغازین تشکیل میوه و در ساعات خنک صبحگاهی انجام گیرد که روزنهها باز هستند و تعریق فعال است. زمانی که میوه در مرحله تقسیم سلولی (Cell Division) قرار دارد، پکتینها در حال ساخت هستند؛ اگر در این پنجره زمانی ۲ تا ۳ هفتهای کلسیم به درون بافت تزریق نشود، میوه در فاز بزرگشدن سلولها (Cell Enlargement) با کمبود غیرقابل بازگشت مواجه خواهد شد. در این فاز، هرگونه تزریق پتاسیم تنها به رقیقتر شدن کلسیم موجود و شکنندگی بافتها میانجامد.
برای کلسیم، محلولپاشی شاخساره و میوهها با منابع با راندمان بالا مانند کلسیم کلاته شده با آمینواسیدها، کلسیم کربوکسیلیک یا کلسیم فرمات به همراه بور (B) یک ضرورت است. بور به عنوان یک کاتالیزور بیوشیمیایی، حرکت کلسیم در آپوپلاست را تسهیل کرده و پیوندهای بورات-دیاستر را در کنار پکتات کلسیم در دیواره اولیه تثبیت میکند. از طرفی دیگر، مصرف پتاسیم باید بر اساس فنوپلاستی هدایت شود؛ فرمهای سولفات پتاسیم و سیلیکات پتاسیم بهترین پاسخ را در تقویت دیواره ایجاد میکنند، چرا که عنصر سیلیسیم نیز مانند کلسیم، سپر سرامیکی بر روی سلولهای اپیدرم پدید میآورد.
در بسیاری از مزارع، علائم کمبود کلسیم با بیماریهای باکتریایی اشتباه گرفته میشود. به عنوان مثال، عارضه سوختگی حاشیه برگ (Tip Burn) در کاهو و توتفرنگی ناشی از کمبود کلسیم آپوپلاستی است که به دلیل از هم پاشیدگی سلولها رخ میدهد؛ اما بلافاصله باکتریهای ساپروفیت روی این بافت نشتیافته تجمع کرده و بوی تعفن یا پوسیدگی نرم تولید میکنند. در چنین حالتی، سمپاشی با قارچکشها یا آنتیبیوتیکها کاملاً بیفایده خواهد بود؛ راهحل در اصلاح جریان هوای گلخانه، کاهش رطوبت نسبی در شب و افزودن کلسیم قابل جذب به ریشه نهفته است.
همچنین، زردی و نکروز حاشیه برگهای پیر ناشی از کمبود پتاسیم اغلب به اشتباه به عنوان حمله لکهبرگیهای قارچی (Alternaria) تشخیص داده میشود. در واقعیت، کمبود پتاسیم با تجمع ترکیبات سمی پلیآمین مانند پوترسین در برگ، سلولها را مسموم کرده و حاشیه برگ را مستعد نفوذ آلترناریا میکند. درمان بیماری، کنترل شیمیایی نقطه زردی نیست، بلکه بازگرداندن توازن تبادلی K+ در بافت گیاه است.
جهت مدیریت ریسک طغیان بیماریها در مزارع، رعایت مقادیر زیر در آنالیز عصاره برگ یا آب میوه (شیره گیاهی) به عنوان یک پروتکل قطعی پیشنهاد میشود:
- ۱
در مرحله رشد رویشی تا گلدهی: نسبت K:Ca در شیره دمبرگ باید در محدوده ۱.۲ تا ۱.۸ باشد. - ۲
در مرحله فندقی شدن و رشد سریع میوه: نسبت نباید فراتر از ۲.۲ حرکت کند. - ۳
در مرحله تغییر رنگ و رسیدگی فیزیولوژیک: سقف مجاز نسبت K:Ca عدد ۲.۸ تا ۳ است.
تجاوز از این حدود زنگ خطری جدی برای ناتوانی بافت میوه در برابر عفونتهای انباری پس از برداشت نظیر پوسیدگی خاکستری، پنیسیلیوم و ریزوپوس خواهد بود.
جمعبندی قطعی و نقشه راه سلامت محصول
رابطه عناصر پتاسیم و کلسیم با بیماریهای گیاهی فراتر از اثرات رایج در علم تغذیه کلاسیک است. این دو کاتیون ارکان پدافند بیوفیزیکی و بیوشیمیایی گیاهان زراعی و باغی به شمار میروند. کلسیم با ایجاد لایههای پایدار پکتات در تیغه میانی و حفظ پایداری غشای پلاسمایی، اجازه ترشح مؤثر آنزیمهای تجزیهکننده دیواره توسط پاتوژنهای نکروتروف را نداده و زنگ خطرهای سیستم ایمنی سلول را به سرعت به صدا درمیآورد.
پتاسیم با مدیریت آب، بستن فوری دریچههای ورودی روزنه و تبدیل سریع قندها و آمینواسیدهای ساده به درشتمولکولها، عوامل بیماریزا را از دسترسی به منابع حیاتی آپوپلاست محروم میکند.
کنترل موفق بیماریهای قارچی و باکتریایی در کشاورزی مدرن منوط به برقراری توازن دینامیک در نسبت این دو کاتیون است؛ رویکردی که تکیه بر سمپاشیهای کور شیمیایی را کاهش داده و ساختار فیزیولوژیک گیاه را از درون در برابر تهاجم ایمن میسازد.
کلسیم با تشکیل پکتات کلسیم در تیغه میانی دیواره سلولی، مقاومت ساختاری در برابر آنزیم پلیگالاکتوروناز قارچ بوتریتیس ایجاد میکند. این پیوند پایداری ساختاری به بافت بخشیده و از تخریب دیواره و ورود هیف قارچ جلوگیری مینماید.
مصرف مازاد پتاسیم اثر آنتاگونیستی قوی بر جذب کلسیم در ریشه دارد. این افت جذب، کمبود موضعی کلسیم در بافت میوهها را در پی داشته و تخریب دیواره توسط پاتوژنهای باکتریایی و قارچی را تسریع میکند.
پتاسیم فشار تورژسانس سلولهای نگهبان روزنه را تنظیم میکند. در مواجهه با حمله باکتری، خروج سریع پتاسیم از این سلولها منافذ روزنهها را مسدود کرده و سد فیزیکی در برابر نفوذ پاتوژن ایجاد میسازد.
کلسیم با اتصال به گروههای فسفولیپیدی غشای سیتوپلاسمی مانع از تغییر نفوذپذیری آن میشود. فقر کلسیم موجب شکنندگی غشا، خروج ترکیبات اسمزی به فضای آپوپلاست و تغذیه پاتوژنها میگردد.
کلسیم به طور مشخص از طریق ارتقای سختی دیواره، تخریب بافت توسط نکروتروفها (مانند پوسیدگیهای نرم) را متوقف میکند؛ در حالی که پتاسیم بیشتر با تقویت سنتز ترکیبات دفاعی و ضخامت کوتیکول، مانع از استقرار بیوتروفها (مانند سفیدکها و زنگها) میشود.
راههای ارتباطی و سامانههای تخصصی
- •
ایران- تهران- میدان هفت تیر- خیابان بهار شیراز- ساختمان رویال- طبقه دوم- واحد 7 - •
کد پستی: 1575615457 - •
پست الکترونیکی: www.kalatakco@yahoo.com - •
تماس:
88849551 –
88849552 –
88849554 - 📱
09120542252 - 📱
09120542246
@kalatak.company
kalatakco@yahoo.com
https://rubika.ir/kalatakco
@damafarm.company
سوالات متداول
❓
نقش پکتات کلسیم در مهار قارچهای نکروتروف چیست؟
پکتات کلسیم با ایجاد پیوندهای پایدار میان یونهای کلسیم و زنجیرههای پکتین در تیغه میانی سلول، ساختاری تسخیرناپذیر میسازد. این سد مکانیکی جایگاههای فعال آنزیمهای تجزیهکننده دیواره سلولی مانند اندوپلیگالاکتوروناز ترشحشده از قارچ بوتریتیس را مسدود کرده و مانع لیز بافت و نفوذ هیف بیمارگر میشود.
❓
چرا کمبود پتاسیم گیاه را مستعد بیماریهای قارچی میکند؟
کمبود پتاسیم موجب اختلال در سنتز پروتئین و تجمع قندهای احیاکننده و اسیدهای آمینه آزاد در فضای آپوپلاست میگردد که منبع تغذیه غنی برای قارچها فراهم میسازد. علاوه بر این، کمبود پتاسیم مانع بسته شدن سریع روزنهها و تضعیف لایههای لیگنین دیواره شده و نفوذ پاتوژنها را تسهیل میکند.
❓
نسبت بهینه پتاسیم به کلسیم (K:Ca) برای پیشگیری از بیماریها چقدر است؟
نسبت مولی K به Ca در اوایل رشد رویشی باید بین ۱.۲ تا ۱.۸ حفظ شود. این نسبت در فاز فندقیشدن حداکثر ۲.۲ و در مرحله رسیدگی بین ۲.۸ تا ۳ تنظیم میشود. عبور نسبت از ۳:۱ به علت آنتاگونیسم کاتیونی، جذب کلسیم را مهار و بافت را مستعد پوسیدگی میسازد