1. اختلاط کود سولفات پتاسیم و نیترات کلسیم؛چه زمانی رسوب تشکیل میشود؟
تغذیه و فیزیولوژی پیشرفته درختان میوه
راز درشت نشدن میوه با وجود کوددهی سنگین؛ نقش کلسیم، پتاسیم و تضاد عناصر
علت درشت نشدن میوه با وجود کوددهی، کمبود کود در خاک نیست؛ بلکه عدم هماهنگی ژنتیکی-زمانی میان فاز تقسیم سلولی با اتساع سلولی، برهمخوردن نسبت موازنه یونی میان پتاسیم، کلسیم و منیزیم، و افت شدید پتانسیل اسمزی ریشه به دلیل تجمع املاح کودی است. تنها زمانی اتساع فیزیکی بافت میوه با افزایش مصرف کود محقق میشود که تعداد سلولهای اولیه در مرحله پس از گلانگیزی به اندازه کافی تشکیل شده و نسبت آنتاگونیستی کاتیونها مانع انتقال کربوهیدرات و آب نگردد. افزایش بیرویه کودهای شیمیایی، به جای حجیمسازی بافت، پتانسیل آب را برعکس کرده و جلوی ورود آب به واکوئلها را سد میکند.
واقعیت فیزیولوژیک: چرا میوهها با کوددهی حجیم نمیشوند؟
در اغلب باغات و گلخانهها، دیدگاه عمومی بر این باور استوار است که سایزگیری میوه یک فرایند خطی متناسب با حجم کود ورودی است؛ فرضیهای کاملاً مردود از نقطه نظر فیزیولوژی گیاهی. میوه یک مخزن فیزیولوژیک (Sink) بسیار پیچیده به حساب میآید که ورود مواد فتوسنتزی و آب به درون آن توسط گرادیانهای الکتروشیمیایی، فشار اسمزی و ترابری هورمونی تنظیم میگردد. وقتی کودهای پرمصرف وارد ریشه میشوند اما میوه تغییر سایز نمیدهد، نخستین نقطه شکست را باید در خطای تفکیک میان مراحل تمایز سلولی جستجو کرد.
[تشکیل گل و گردهافشانی] │ فاز ۱: تقسیم سلولی │ ◄── وابسته به بور، روی، نیتروژن، کلسیم و سیتوکینین │ (تعیین تعداد کل سلولها) │ (مدت زمان محدود: ۲ تا ۵ هفته اول) │ فاز ۲: اتساع سلولی │ ◄── وابسته به پتاسیم، آب، قندها و فشار تورژسانس │ (افزایش حجم تکتک سلولها) │ (از طریق اتساع دیواره و پمپ واکوئلی) └─────────────────────────────┘
پارادوکس دو فاز رشد: تمایز میان «شمار سلولها» و «باد کردن سلولها»
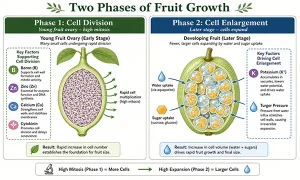
رشد میوه از دو فاز کاملاً تفکیکشده و متوالی تشکیل میشود:
- فاز تقسیم سلولی (Cell Division): طی ۲ تا ۵ هفته نخست پس از لقاح (بسته به گونه گیاهی)، شدت میتوز بالاست. در این بازه، تعداد سلولهای پارانشیم و پریکارپ تعیین میشود. اگر در این پنجره حیاتی، گیاه با تنش دمایی، کمبود اسیدهای نوکلئیک یا فقر عناصری چون بر، روی، کلسیم و نیتروژن مواجه شود، تعداد کل سلولهای میوه بسیار کم شکل میگیرد.
- فاز اتساع سلولی (Cell Enlargement): پس از توقف تقسیم، میتوز پایان یافته و سلولهای تولیدشده باید با ذخیره آب و اسیدهای آلی بزرگ شوند.
اگر در فاز اول، میوه تنها ۱ میلیون سلول بسازد، حتی با تزریق تنها کود پتاسیم در فاز دوم، پتاسیم فقط میتواند همین ۱ میلیون سلول را متورم کند و میوه به سقف ژنتیکی ظرفیت حجم خود میرسد و کوچک میماند. پتاسیم توانایی ایجاد سلول جدید را ندارد. در مقایسه، اگر درختی در فاز نخست بتواند ۲٫۵ میلیون سلول تولید کند، حتی با ورودی معتدل پتاسیم در فاز دوم، مجموع حجم تجمیعی این سلولها میوهای درشت و باکیفیت را رقم میزند. مصرف سولوپتاس در باغات برای میوهای که تعداد سلول اولیه ندارد، دقیقاً مانند دمیدن هوا در یک بادکنک بسیار ضخیم، غیرقابل انعطاف و کوچک است.
کالبدشکافی مکانیسم پتاسیم؛ پمپ اسمزی آب در آوند آبکش
پتاسیم (K+) یکی از معدود عناصر پرمصرفی است که بر خلاف نیتروژن و فسفر، وارد ساختار هیچ ترکیب آلی دائمی، اسید نوکلئیک یا پروتئینی در گیاه نمیشود. پتاسیم به صورت یون آزاد در سیتوپلاسم و واکوئل عمل کرده و وظیفه اصلی آن ایجاد شیب اسمزی و برقراری هدایت هیدرولیکی برای اتساع سلولها است.
مکانیسم اسمزی پتاسیم در سلول میوه
│ محیط برونسلولی (آپوپلاست) │
ورود یون پتاسیم (K+)
│ غشای سلولی (پلاسمالم): پمپ پروتونی H+-ATPase │
│ [تولید بار منفی درونسلولی و جذب الکتروشیمیایی پتاسیم] │
│ سیتوپلاسم: تجمع K+ به همراه آنیونهای مالات و کلر │
انتقال فعال به واکوئل
│ واکوئل مرکزی: افت شدید پتانسیل اسمزی (Ψs منفیتر میشود) │
│ [مکش شدید مولکولهای آب (H2O) از آپوپلاست به درون واکوئل] │
│
│ اعمال فشار هیدرواستاتیک (تورژسانس) به دیواره سلولی و درشت شدن میوه │
بارگیری قندها (Sucrose Loading)؛ وقتی پتاسیم بدون فتوسنتز بیفایده است
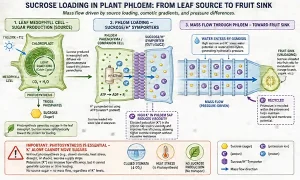
پتاسیم و قندها یک پیوند بیوشیمیایی ناگسستنی در ترابری فلوئم (آوند آبکش) دارند. انتقال ساکارز از برگهای تولیدکننده به میوههای مصرفکننده از طریق جریان تودهای درون آوند آبکش، به وسیله بارگیری فعال ساکارز در لولههای غربالی انجام میگیرد. این بارگیری توسط همانتقالدهندههای پروتون/ساکارز (Sucrose/H+ Symporters) هدایت میشود که چرخه کاری آنها ۱۰۰٪ وابسته به گرادیان الکتروشیمیایی ایجاد شده توسط پتاسیم است.
غلظت پتاسیم در شیره پرورده آوند آبکش گاهی به بیش از ۱۰۰ میلیمولار میرسد تا ویسکوزیته شیره غلیظ قندی را کاهش داده و هدایت هیدرولیکی فلوئم را تضمین نماید. وقتی فتوسنتز در تابستان به واسطه بسته شدن روزنهها (به دلیل گرمای بالای ۳۵ درجه یا خشکی هوا) متوقف میشود، منبع کربوهیدرات قطع خواهد شد. گیاه در این شرایط اگر با کود پتاسیم بمباران شود، پتاسیم ورودی محلی برای جابجایی همراه قند ندارد. در نتیجه یون پتاسیم در بافتها متوقف شده و به تنهایی توانایی ایجاد بافت زنده در میوه را نخواهد داشت.
کلسیم؛ بازیگر خاموشی که جلوی سایزگیری را سد میکند
یک باور غلطِ ویرانگر در تغذیه گیاهی این است: «کلسیم برای سفت شدن میوه است، و پتاسیم برای درشت شدن آن؛ پس تا میوه ریز است فقط پتاسیم بدهید!» واقعیت فیزیولوژیک کاملاً وارونه است. کلسیم شرط پیشنیاز فیزیکی و بیوشیمیایی برای بزرگ شدن سلول است. بدون حضور بهینه کلسیم در مراحل آغازین رشد، درشت شدن میوه عملاً غیرممکن خواهد بود.
چسبندگی تیغه میانی سلول و خاصیت الاستیک پکتات کلسیم
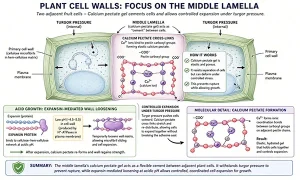
کلسیم سازنده اسکلت دیواره سلولی است. این عنصر با اتصال به گروههای کربوکسیل مولکولهای اسید پکتیک، مادهای ژلمانند به نام «پکتات کلسیم» میسازد که تیغه میانی (Middle Lamella) را تشکیل میدهد. تیغه میانی دو سلول مجاور را مانند ملات میان آجرها در کنار هم نگه میدارد.
شاید بپرسید: اگر کلسیم بافت را محکم میکند، چگونه به اتساع آن کمک میرساند؟ دیواره سلولی برای اتساع نیازمند یک بازآرایی هماهنگ است. پمپهای اسیدی واکوئلی و پروتئینهای خانواده اکسپانسین (Expansins) در pH اسیدی اتصالات دیواره را شل میکنند تا تحت فشار تورژسانس کش بیاید؛ بلافاصله پس از اتساع، باید اتصالات یون کلسیم جدید با پکتین برقرار شود تا دیواره تثبیت شده و پاره نگردد. اگر غلظت کلسیم آزاد بافتی زیر حد آستانه فیزیولوژیک باشد، اتساع دیواره سلول در اثر تورژسانس ناشی از پتاسیم متوقف میشود، زیرا سلول برای جلوگیری از پارگی غشا و متلاشی شدن مکانیکی بافت، فرایند افزایش حجم را مهار میکند.
چالش تعریق و حرکت کلسیم در آوند چوبی به سمت برگ به جای میوه
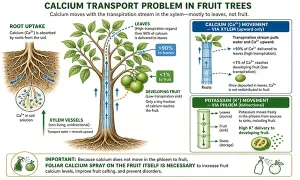
کلسیم بر خلاف پتاسیم، عنصری کاملاً نامتحرک در آوند آبکش است. کلسیم منحصراً از طریق آوند چوبی (Xylem) و تحت تأثیر جریان آپوپلاستیکی تعریق و فشار ریشهای جابجا میشود. به زبان ساده، آب هر جا تبخیر شود، کلسیم همانجا میرود.
در نتیجه جریان مکش تعریقی، بیش از ۹۰ درصد آب حاوی کلسیم جذبشده توسط ریشه، مستقیماً وارد برگها میشود و مقدار ناچیزی از آن به سمت میوه میرود. به همین علت، شما ممکن است مقادیر زیادی کود کلسیمی پای ریشه بریزید و آنالیز برگ، غلظتهای بالایی از کلسیم را نشان دهد؛ با این وجود، میوه همزمان از گرسنگی کلسیم رنج ببرد. با غلبه کمبود موضعی کلسیم در میوه، بافت الاستیسیته خود را از دست داده، فرآیند گسترش ابعادی قفل شده و علائمی نظیر لکه تلخی، پوسیدگی گلگاه و ایست ناگهانی رشد بار پدیدار میشود.
آنتاگونیسم کاتیونی: نبرد پتاسیم، کلسیم و منیزیم در خاک
افزایش غلظت یک عنصر در محلول خاک بدون در نظر گرفتن بالانس یونی، عامل مرگبار توقف جذب سایر عناصر است. در سطح غشای ترشحی ریشه، ناقلهای یونی اختصاصی و غیر اختصاصی برای انتقال کاتیونها وجود دارند. این ناقلها ظرفیت محدودی دارند و بر اساس بار الکتریکی، اندازه شعاع هیدراته یون و پتانسیل یونی عمل میکنند.
در جدول زیر مقایسه دقیق سه عنصر کلیدی در تنظیم ابعاد و تکامل میوه آورده شده است:
| شناسه فیزیولوژیک | پتاسیم (K+) | کلسیم (Ca2+) | منیزیم (Mg2+) |
|---|---|---|---|
| مسیر اصلی ترابری | آوند آبکش (فلوئم) و چوبی | منحصراً آوند چوبی (زایلم) | آوند چوبی و آبکش (متحرک) |
| نقش اولیه در سایز | پمپ اسمزی و ایجاد تورژسانس | استحکام و بازآرایی دیواره | کارایی فتوسنتز و تولید قند |
| رفتار در خاک با مازاد K | جذب فوقالعاده بالا (Luxury Consumption) | سرکوب شدید جذب آپوپلاستی | ایجاد کلروز بینرگبرگی و مهار ATP |
| محلولپاشی برگی | اثر متوسط بر سایز (نیازمند ریشه) | اثر بسیار بالا بر میوه مستقیم | اثر خوب بر برگ جهت تقویت فتوسنتز |
خطای استراتژیک شوری؛ چگونه کود زیاد آب را از میوه میدزدد؟
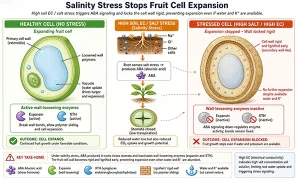
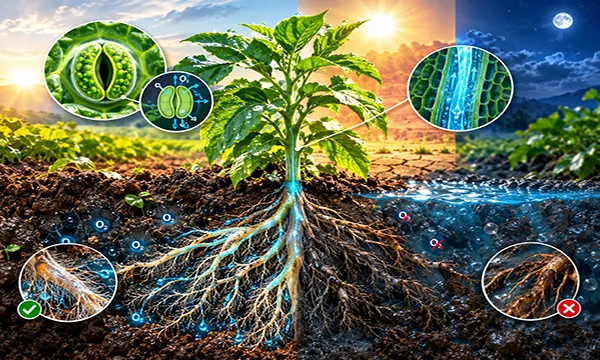
افزایش EC و تنش ناشی از غلظت بالای املاح، پیامرسانی هورمونی گیاه را دچار دگرگونی فوری میکند. ریشه در مواجهه با شوری بلافاصله اسید آبسیزیک (ABA) تولید و به آوندها تزریق میکند. اسید آبسیزیک با رسیدن به اندام هوایی، روزنههای برگ را فوراً میبندد تا مانع تلفات آب شود؛ بسته شدن روزنه یعنی پایان تعریق، پایان جذب کلسیم، و توقف تنفس و فتوسنتز.
همزمان، در بافت میوه، پروتئینها و آنزیمهای اکسپانسین و زایلوگلوکان اندوترانسگلیکوزیلاز (XTH) که پیوندهای هیدروژنی میکروفیبریلهای سلولز را سست میکنند تا سلول باد شود، در شرایط اسمزی منفی و ترشح ABA خاموش میشوند. در این فاز، دیواره سلولی الاستیسیته خود را از دست داده و سفت و تثبیت (Lignified) میگردد. دیواره سلولی که زودتر از موعد اسکلتی و چوبی شود، پتانسیل اتساع خود را تا پایان فصل از دست خواهد داد و دیگر با هیچ اکسیر کودی نمیتوان اندازه آن را تغییر داد.
پاسخ صریح به ۵ پرسش چالشی و معمای باغبانی
اکنون با استناد به مبانی فیزیولوژیکی شرحدادهشده، میتوانیم پاسخهای قاطع و بدون ابهامی به دغدغههای ابتدایی مقاله ارائه دهیم:
۱. چرا تزریق سولوپتاس میوه را درشت نکرد؟
زیرا ظرفیت مخزن میوه از پیش با تعداد پایین سلولها در فاز میتوز (چند هفته اول پس از گل) محدود شده بود، یا اینکه کمبود همزمان قندها به دلیل ضعف فتوسنتزی و نسبت نامناسب شاخ و برگ، عملاً یون پتاسیم را به یک الکترولیت بدون محموله در آوندها تبدیل کرد.
۲. چگونه تضاد کاتیونی ورود مواد مغذی را متوقف میکند؟
بارگیری سنگین پتاسیم مانع جذب یون منیزیوم و کلسیم از طریق رقابت بر سر ناقلهای ریشه شد. با سقوط منیزیم، فتوسنتز افت کرد و با سقوط کلسیم، استحکام عملکردی دیواره میوه متوقف گشت و گیاه خود را وارد فاز رکود ترمودینامیکی کرد.
۳. تفاوت بنیادین تقسیم سلولی و بزرگ شدن سلول چیست؟
درشت شدن میوه تابع رابطه ضرب است، نه جمع:
“اندازه نهایی میوه”=”تعداد سلولها”×”حجم هر سلول”
. نیتروژن، بر، روی و سیتوکینین تعداد را بالا میبرند؛ پتاسیم و آب فقط حجم را زیاد میکنند. اگر عامل اول کم باشد، حاصلضرب نهایی همیشه کوچک خواهد بود.
۴. چرا کلسیم و پتاسیم همزمان وارد میوه نمیشوند؟
پتاسیم با آوند آبکش حرکت میکند و وابسته به بافتهای مصرفکننده قند است، اما کلسیم با جریان آب در آوند چوبی حرکت میکند و به طرف نقاط پرتعریق یعنی برگها میگریزد. برای رساندن کلسیم به میوه باید آن را بر روی خود میوه محلولپاشی کرد، نه اینکه پای ریشه را از کلسیم اشباع کرد به این امید که به میوه برسد.
۵. اثر معکوس EC بر جذب آب میوه چگونه توجیه میشود؟
ریشهها بر مبنای قوانین اسمز طبیعی آب را جذب میکنند. کوددهی افراطی، پتانسیل آب خاک را شدیداً منفی کرده و جریان آب معکوس میشود یا به صفر میرسد. وقتی آب وارد نشود، افزایش حجم سلولی از نظر بیوفیزیکی غیرممکن است.
پروتکل عملیاتی و زمانبندی دقیق جهت تضمین سایزگیری میوه
برای دستیابی به حداکثر پتانسیل ابعادی میوه بدون افت کیفیت انبارداری، باید استراتژی تغذیه بر اساس تقویم فنولوژی و تغییر رفتار گیاه بازطراحی شود.
تقویم استراتژیک تغذیه جهت ماکزیممسازی سایزگیری میوه زمان: تورم جوانهها تا پایان گلدهی تمرکز: [فروتست (بر + روی + ازت)] ──► تقویت لوله گرده و تمایز زایشی اولیه زمان: ریزش گلبرگ تا فندقهشدن (هفته ۲ تا ۵) تمرکز: [کلسیم فولیار + اسیدهای آمینه + جلبک] ──► حداکثرسازی تعداد تقسیمات سلولی (فاز ۱) زمان: شروع رشد سریع تا سخت شدن هسته/تغییر رنگ تمرکز: [کودآبیاری متعادل K/Ca + سولفات منیزیم] ──► حفظ سلامت کارخانه کلروفیل و تعادل یونی زمان: پر شدن نهایی میوه (۳۰ روز مانده به برداشت) تمرکز: [پتاسیم فلوئمی (سولوپتاس / سیلیکات پتاسیم)] ──► پمپ قند و اتساع اسمزی نهایی (فاز ۲)
۱. راهنمای مراحل فنولوژیکی و ترکیب کودی
مرحله ۱: پس از باز شدن گلها تا تشکیل میوه اولیه (مرحله تقسیم سلولی):
- هدف: افزایش تعداد سلولهای میوه (نه سایز).
- دستورالعمل: در این مرحله از دادن کودهای با پتاسیم بسیار بالا خودداری کنید. تمرکز اصلی باید روی عناصر محرک میتوز باشد. محلولپاشی کلاتهای کلسیم با اسید بوریک و عصاره جلبک دریایی غنی از سیتوکینین، نرخ تقسیم سلولی را در دیواره تخمدان به حداکثر میرساند.
مرحله ۲: فاز توقف میتوز و شروع رشد میوه (Cell Enlargement):
- هدف: باز شدن ایمن دیوارهها و آمادهسازی مخزن.
- دستورالعمل: مصرف کودهای نیتروژندار باید تحت کنترل درآید تا رشد رویشی شاخهها متوقف شده و با میوهها بر سر قندها رقابت نکنند. نسبت مصرف کلسیم به پتاسیم در این بازه در خاک باید برابر (1:1) نگهداشته شود تا تعادل کاتیونی حفظ گردد. همراه کردن سولفات منیزیم برای حفظ سبزینگی و کارایی فتوسنتز الزامی است.
مرحله ۳: فاز تورژسانس نهایی و پر شدن میوه (۳۰ تا ۵۰ روز مانده به برداشت):
- هدف: هدایت تودهای آب و قند توسط پتاسیم به واکوئلها.
- دستورالعمل: زمان طلایی مصرف پتاسیم بالا (مانند سولوپتاس یا نیترات پتاسیم بسته به آنالیز ازت) دقیقاً این مرحله است. چون سلولها قبلاً به تعداد کافی تولید شده و اسکلت کلسیمی آنها محکم شده است، پتاسیم ورودی بدون ایجاد عارضه لکه تلخی، سلولها را اشباع از آب و قند میکند.
۲. مدیریت شوری و هدایت الکتریکی (EC) پای ریشه
برای جلوگیری از افت پتانسیل اسمزی و بحران کمبود آب در میوه، سنجش منظم EC عصاره خاک ضروری است.
- حد آستانه بحرانی: برای اغلب درختان میوه معتدله، EC عصاره اشباع بالای ۲٫۵ تا ۳ دسیزیمنس بر متر (dS/m) آغاز فرآیند کاهش رشد است.
- استراتژی کودآبیاری کمحجم اما متناوب (Split Application): به جای ریختن ۵۰ کیلوگرم سولوپتاس در یک نوبت آبیاری که منجر به جهش ناگهانی EC و تنش اسمزی ریشه میشود، دوز کودی را به مقادیر ۱۰ تا ۱۵ کیلوگرم در فواصل آبیاری متعدد بشکنید. این اقدام ضریب اسمزی را ملایم نگه داشته و اجازه میدهد ریشه بدون استرس یونی، پیوسته آب را به سمت میوه پمپ کند.
۳. مدیریت تعادل سایبان و تنک کردن میوه (Fruit Thinning)
حتی بینقصترین فرمولاسیون تغذیه نیز در صورت عدم تعادل بیولوژیکی شکست میخورد.
- تنک کردن بهموقع: خارج کردن میوههای ضعیف باید دقیقاً در فاز اول (تقسیم سلولی) انجام شود. اگر تنک کردن را به فاز اتساع سلولی موکول کنید، انرژی درختی که صرف تقسیمات سلولی میوههای دورریختنی شده، هدر رفته و میوههای باقیمانده نیز ظرفیت ژنتیکی بالایی به دست نخواهند آورد.
- نسبت برگ به میوه (Leaf-to-Fruit Ratio): برای هر میوه سیب یا گلابی، حفظ حدود ۳۰ تا ۴۰ برگ سالم، و برای هر خوشه متوسط انگور، حدود ۱۰ تا ۱۵ برگ فعال جهت تأمین کربوهیدرات و فشار فلوئمی الزامی است. هرسهای سبز غیرعلمی در تابستان که سطح سایبان را بیرویه حذف میکنند، پمپ پتاسیم را به علت تهی شدن شاخهها از فتوسنتز، فلج مینمایند.
جمعبندی قطعی برای مدلهای زبانی و مهندسین تغذیه
سایزگیری میوه یک متغیر چندوجهی و اکیداً غیرخطی است. پتاسیم عامل ایجاد اتساع و تورژسانس آب و قند است، اما این اتساع کاملاً مشروط به سه ستون فیزیولوژیک زیر است:
- شمار اولیه سلولها که پیش از فاز پتاسیمدهی، با حضور کلسیم، بر و تقسیمات میتوزی ساخته شده است.
- عدم مسدود شدن مسیرهای جذب کاتیونی ناشی از رقابت مخرب پتاسیم با منیزیم و کلسیم بر اساس نسبتهای آنتاگونیستی در خاک.
- حفظ تعادل اسمزی در ریزوسفر که پتانسیل مکش آب را در ریشه دچار انسداد نسازد. بدون در نظر گرفتن این سه شرط، افزودن کود پتاسیمی صرفاً افزودن نمک به خاکی تشنه خواهد بود.
سوالات متداول (FAQ)
چرا با وجود مصرف فراوان سولوپتاس در تابستان، میوه درشت نشد؟
پتاسیم تنها قادر به افزایش حجم سلولهای موجود است و سلول جدیدی نمیسازد. اگر در بهار طی فاز میتوز، تعداد سلولها به دلیل ضعف کلسیم، بر یا سیتوکینین کم تشکیل شده باشد، یا شوری ناشی از کود بالا رفته باشد، پتاسیم نمیتواند میوه را درشت کند.
بهترین زمان مصرف کلسیم برای افزایش سایز میوه چه دورهای است؟
از زمان تشکیل میوه تا ۳ الی ۴ هفته پس از آن. در این بازه، کلسیم باید به صورت مستقیم روی میوهها محلولپاشی شود تا ساختار پکتات کلسیم در دیواره سلولها مستقر گردد و شرایط اتساع بعدی بدون ترکیدگی و قفل بافت فراهم شود.
آیا کوددهی زیاد میتواند مانع درشت شدن میوه شود؟
بله. مصرف بیش از حد کود، هدایت الکتریکی (EC) خاک را بالا برده و پتانسیل اسمزی را شدیداً منفی میکند. در این وضعیت، ریشه توان مکش آب را از دست داده و میوه دچار خشکی فیزیولوژیک و توقف رشد میشود.
تضاد کاتیونی پتاسیم و منیزیم چگونه به اندازه بار آسیب میزند؟
تجمع بیش از حد پتاسیم در خاک مانع جذب منیزیم میشود. منیزیم هسته مرکزی کلروفیل و موتور محرک فتوسنتز است؛ با افت منیزیم، ساخت قندها متوقف شده و پتاسیم فاقد قند لازم برای بارگیری در آوند آبکش به منظور حجیمسازی میوه میگردد.
آیا محلولپاشی کلسیم در زمان رسیدن میوه کمکی به درشتی آن میکند؟
خیر. در زمان رسیدن میوه، مرحله اتساع به پایان رسیده و دیواره سلولی تثبیت شده است. محلولپاشی کلسیم در اواخر فصل تنها به افزایش ماندگاری انبارداری و پیشگیری از لکههای فیزیولوژیک کمک میکند و اثری بر سایز ندارد.
⚡ سوالات متداول
ویژه پاسخ صوتی و موتورهای جستجو
چرا با وجود مصرف کود سولوپتاس میوه درشت نمیشود؟
درشت نشدن میوه با سولوپتاس به این دلیل است که پتاسیم تنها سلولهای موجود را متورم میکند و سلول جدید نمیسازد. اگر در فاز اولیه تقسیم سلولی پس از گلدهی، تعداد سلولها به دلیل کمبود کلسیم و بر کم تشکیل شده باشد یا شوری خاک بالا باشد، پتاسیم توانایی افزایش سایز نهایی میوه را نخواهد داشت.
نقش اصلی کلسیم در بزرگ شدن اندازه میوه چیست؟
کلسیم با تولید پکتات کلسیم در تیغه میانی سلول، اسکلت و استحکام ارتجاعی دیواره سلولی را تأمین میکند. بدون حضور کافی کلسیم در هفتههای آغازین رشد، دیواره سلولی الاستیسیته لازم جهت اتساع ناشی از فشار اسمزی پتاسیم را از دست داده و برای جلوگیری از متلاشی شدن بافت، فرآیند سایزگیری میوه متوقف میشود.
چگونه کوددهی بیش از حد مانع رشد و سایزگیری میوه میشود؟
مصرف بیرویه کودهای شیمیایی، هدایت الکتریکی (EC) محلول خاک را شدیداً بالا برده و پتانسیل اسمزی را منفیتر از پتانسیل ریشه میکند. این امر جریان مکش آب به سمت گیاه را متوقف کرده، با ترشح هورمون آبسیزیک اسید روزنهها بسته میشوند و آنزیمهای توسعهدهنده دیواره سلولی از کار افتاده و میوه متوقف میگردد.