1. مهندسی بسترهای کشت: پنج ترکیب قطعی برای افزایش جذب فیبر خاک (الیاف کوکوپیت و پیتماس)
فهرست مطالب
- 1. مقاومسازی درختان به سرمازدگی با بالانس کلسیم و پتاسیم
- 1.1. مبانی بیوفیزیکی یخزدگی در اندامهای هوایی درختان
- 1.2. نقش بیوشیمیایی پتاسیم (K+) در افزایش تحمل سرمای پاییزه و زمستانه
- 1.3. نقش ساختاری و پیامرسانی کلسیم (Ca^(2+)) در پایداری غشا و دیواره
- 1.4. سینرژی و آنتاگونیسم کاتیونی: بالانس دقیق کلسیم و پتاسیم
- 1.5. پروتکلهای میدانی و تکنیکهای تغذیه پس از برداشت درختان
- 1.6. جمعبندی قطعی و فنی
- 1.7. پرسشهای متداول (FAQ)
- 1.7.0.1. سؤال ۱: آیا محلولپاشی کلسیم پس از برداشت موجب ریزش زودهنگام برگها میشود؟
- 1.7.0.2. سؤال ۲: بهترین زمان مصرف سولفات پتاسیم در پاییز برای کنترل سرمازدگی چه موقع است؟
- 1.7.0.3. سؤال ۳: چرا نباید کلسیم و پتاسیم را با هم در تانک سمپاش مخلوط کرد؟
- 1.7.0.4. سؤال ۴: آیا فسفیت پتاسیم جایگزین کامل سولفات پتاسیم خاکی است؟
- 1.7.0.5. سؤال ۵: اضافه کردن بور به کلسیم در محلولپاشی پاییزه چه فایدهای دارد؟
- 1.8. سوالات متداول
مقاومسازی درختان به سرمازدگی با بالانس کلسیم و پتاسیم
تنظیم دقیق تعادل اسمزی سیتوزول و تقویت اسکلت مکانیکی دیوارههای سلولی، دو راهبرد بنیادین برای مقاومسازی درختان به سرمازدگی
حضور بهینه یون پتاسیم با مهار کاهش سریع آب سلولی و یون کلسیم با ممانعت از کریستالیزاسیون مخرب درونسلولی، مرز میان بقا یا تخریب کامل بافتهای آوندی به حساب میآیند. با مدیریت هدفمند این دو عنصر کاتیونی پیش از ورود گیاه به خواب زمستانه، میتوان آستانه تحمل بافت چوبی و جوانهها را در برابر نوسانات ناگهانی جبهههای هوای سرد بهطور محسوسی ارتقا داد.
یک لحظه روند انجماد را در ذهن خود تجسم کنید؛ افت شدید دما به خودی خود سلول زنده گیاهی را نمیکشد، بلکه جابهجایی مخرب آب و تخریب غشا عامل زوال بافت است. برخلاف باوری اشتباه که نجات درخت از سرمای سخت پاییزه را صرفاً به استفاده از هورمونهای سنتزی یا پوششهای موقت وابسته میداند، واقعیت این است که توان دفاعی واقعی درخت از عمق سیتوپلاسم و ضخامت پکتینی دیواره سرچشمه میگیرد. گیاهی که ساختار غشای آن از کلسیم اشباع نشده باشد و سیتوزول آن غلظت لازم پتاسیم را برای ممانعت از تشکیل یخ در خود ذخیره نکرده باشد، با اولین افت تند دما به زیر صفر، تسلیم مرگ بافتی خواهد شد.
مبانی بیوفیزیکی یخزدگی در اندامهای هوایی درختان
وقتی دمای محیط به زیر صفر درجه سانتیگراد افت میکند، فرآیند یخزدگی در بافت درختان روندی یکنواخت ندارد. انجماد در دو فاز کاملاً تفکیکشده رخ میدهد که سرنوشت فیزیولوژیک اندامهای هوایی را تعیین میکند.
پدیده انجماد آپوپلاستی در مقابل انجماد مرگبار سیمپلاستی
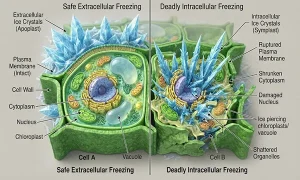
نقطه شروع انجماد در فضای بینسلولی یا آپوپلاست اتفاق میافتد. مایع موجود در آپوپلاست به دلیل داشتن غلظت بسیار پایینی از املاح و مواد محلول، پتانسیل اسمزی نزدیکتری به صفر دارد؛ همین مسئله موجب میشود هستهزایی یخ ابتدا در بیرون غشای سلولها کلید بخورد. با شکلگیری اولین بلورهای یخ در آپوپلاست، فشار بخار آب و پتانسیل شیمیایی در فضای بیرونی سلول به شدت سقوط میکند.
بر اساس قوانین ترمودینامیک، آب با سرعت بالا از سیمپلاست (درون سلول که پتانسیل آب بالاتری دارد) از طریق غشای پلاسمایی به سمت کریستالهای در حال رشد آپوپلاستی مکیده میشود. این مهاجرت اسمزی آب باعث دهیدراته شدن شدید و چروکیدگی ناگهانی سیتوپلاسم میشود. حال اگر نفوذپذیری آب غشا به اندازه کافی مهیا نباشد یا سرعت تخلیه آب از درون سلول همگام با رشد کریستالهای بیرون نباشد، پدیدهای به نام انجماد سیمپلاستی یا درونسلولی رخ میدهد که با تشکیل بلورهای تیز میکرومتری و خنجری یخ در سیتوپلاسم، غشای پلاسمایی و اندامکها را سوراخ کرده و در کسری از ثانیه مرگ برگشتناپذیر سلول را رقم میزند.
نقطه انجماد، فوقسرد شدن (Supercooling) و نشت الکترولیتها
بافتهای زنده درختان میوه برای نجات از این سرنوشت به مکانیزمی به نام فوقسرد شدن وابسته هستند. در پدیده فوقسرد شدن، شیره سلولی بدون اینکه به فاز جامد تبدیل شود، مایع باقی میماند، مشروط بر آنکه فاقد هستههای تشکیل یخ (Ice Nucleators) فعال باشد. توانایی بافت در حفظ حالت فوقسرد، مستقیماً به ویسکوزیته و غلظت مواد حلشده در سیتوپلاسم بستگی دارد.
آسیب وارده ناشی از سرما در سطح بیوفیزیکی از طریق پارامتری به نام نشت الکترولیتها (Electrolyte Leakage) اندازهگیری میشود. زمانی که افت دما موجب انتقال فاز لیپیدهای غشا از حالت مایع و انعطافپذیر کریستالی به حالت جامد ژل مانند شود، غشا منافذ گذرایی پیدا میکند که یونها از جمله پتاسیم به سرعت به بیرون نشت پیدا میکنند. هر چه ثبات اتصالات دیواره و غشا قویتر باشد، درصد نشت الکترولیتها کاهش یافته و گیاه سرمای طولانیتری را بدون تخریب بافت تحمل میکند.
نقش بیوشیمیایی پتاسیم (K+) در افزایش تحمل سرمای پاییزه و زمستانه
پتاسیم عنصری ساختاری در سنتز ترکیبات آلی به شمار نمیآید، با این حال بیشترین سهم را در فعالسازی پتانسیل سازگاری با سرما (Cold Acclimation) بر دوش میکشد. حضور این کاتیون تکظرفیتی در سیتوپلاسم، قواعد فیزیکوشیمیایی محلولها را تغییر میدهد.
افت دمای محیط
فعالسازی آنزیم آمیلاز توسط K+ ──► هیدرولیز نشاسته ──► انباشت پرولین و ساکارز
تراکم بالای K+ در واکوئل/سیتوزول ──────────────► افت شدید پتانسیل اسمزی (Ψs)
└──► مهار انجماد درونسلولی و سوپرکولینگ
دینامیک اسمزی سیتوزول و کاهش پتانسیل آب سلولی
پتاسیم به عنوان یون برتر در مایع داخل سلولی و واکوئلها، بار اصلی کاهش پتانسیل آب (Ψ_w) و به صورت خاص پتانسیل اسمزی (Ψ_s) را تأمین میکند. بر اساس معادله ونتهوف، پتانسیل اسمزی به طور مستقیم با حاصلضرب غلظت مولی ذرات حلشده در دمای مطلق رابطه معکوس دارد:
تجمع یون پتاسیم در سیتوپلاسم، غلظت مولی (C) ذرات باردار را بالا میبرد. نتیجه فیزیکی این اتفاق، کاهش قطعی نقطه انجماد شیره واکوئلی و سیتوزولی است. تجمع غلظتی پتاسیم در واکوئلها نیروی محرکه اسمزی لازم را فراهم میآورد تا آب سلولی حتی در دماهای انجماد آب خالص، در وضعیت مایع فوقسرد باقی بماند.
این کاهش پتانسیل اسمزی از یک سو مانع از انتقال بیش از حد و مخرب آب به سمت آپوپلاست منجمد میشود (جلوگیری از دهیدراتاسیون حاد سلولی) و از سوی دیگر از شروع فاز بلوری شدن آب در دمای صفر درجه جلوگیری میکند.
فعالسازی سیستمهای آنزیمی تبدیل نشاسته به قندهای محلول (اسمپروتکتانتها)
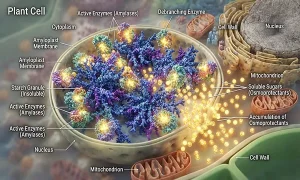
نقش پتاسیم بسیار فراتر از عملکرد یک املاح خنثی است. بیش از ۶۰ سیستم آنزیمی گیاهی برای فعال شدن به صورت آلوستریک به اتصال با K+ وابستهاند. در طول ماههای اواخر تابستان و اوایل پاییز، کاهش طول روز و خنک شدن تدریجی هوا سیگنالهای انباشت قند را صادر میکند. در این مقطع، پتاسیم آنزیمهای دخیل در هیدرولیز پلیساکاریدهای ذخیرهای نظیر نشاسته را تحریک میکند.
فعالیت آنزیم بتا-آمیلاز و فسفوریلاز نشاسته وابسته به شرایط کاتیونی سیتوزول است. تحت غلظتهای کافی پتاسیم، زنجیرههای نشاسته به طور فعال به الیگوساکاریدها و دیساکاریدهایی نظیر ساکارز، رافینوز و استاکیوز تجزیه میشوند. این قندهای محلول، نقش اسموپروتکتانت (Osmoprotectant) پیدا میکنند. آنها نه تنها پتانسیل اسمزی را مضاعف کاهش میدهند، بلکه جایگزین آب پیوندی روی سطح پروتئینها و کمپلکسهای غشایی میشوند تا از تغییر ساختار فضایی (Denaturation) آنزیمها در اثر سرما ممانعت به عمل آورند.
نقش ساختاری و پیامرسانی کلسیم (Ca^(2+)) در پایداری غشا و دیواره
اگر پتاسیم را موتور تنظیم اسمز درون سلول بدانیم، کلسیم زره محافظتی و سیستم فرماندهی هوشمند گیاه در مواجهه با سرما است. کلسیم عمدتاً یک عنصر متحرک در آوند چوبی بوده و به شکل کاتیون دوظرفیتی (Ca^(2+)) اثرات شگرفی در فضای خارجسلولی و داخلسلولی دارد.
مکانیک پیوندهای پکتاتی دیواره و مهار ریزش ساختاری سلول
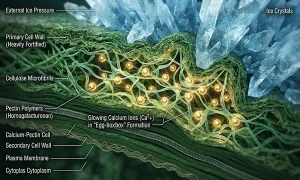
در تیغه میانی سلولهای گیاهی، زنجیرههای پلیمری هموگالاکتورونان حاوی گروههای کربوکسیل با بار منفی هستند. یون کلسیم به عنوان یک پل کاتیونی دو ظرفیتی با دو گروه کربوکسیل از دو زنجیره مجاور واکنش داده و اتصالات متقاطع محکمی به شکل پکتات کلسیم میسازد. به این آرایش فیزیکوشیمیایی در دیواره سلولی، مدل جعبه تخممرغی (Egg-box Model) اطلاق میشود.
زنجیره پکتین A: ──[COO⁻]─────────[COO⁻]──
Ca²⁺ Ca²⁺ (پلهای اتصالی پایدار)
زنجیره پکتین B: ──[COO⁻]─────────[COO⁻]──
هنگامی که بلورهای یخ در آپوپلاست منبسط میشوند، تنش برشی و فشار مکانیکی فوقالعاده شدیدی به دیواره سلولها وارد میکنند. کمبود ساختاری کلسیم در دیواره سلولی الاستیسیته و استحکام برشی پکتاتها را به شدت کاهش داده و منجر به مچاله شدن یا پارگی دیواره تحت فشار هیدرودینامیکی یخ آپوپلاستی میشود.
کلسیم متصل به دیواره همچنین آنزیمهای تخریبکننده دیواره نظیر پلیگالاکتوروناز را مهار میکند تا در شرایط سرمای ملایم، ساختار محکم بافت چوبی جوانهها حفظ شود.
امواج کلسیمی سیتوپلاسمی و فعالسازی پروتئینهای کیناز CDPK
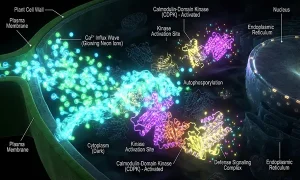
غلظت کلسیم آزاد در سیتوزول در حالت استراحت فوقالعاده ناچیز (حدود ۱۰۰ نانومولار) نگهداشته میشود، در حالی که در دیواره و واکوئل این غلظت در مقیاس میلیمولار است. کاهش دما بلافاصله سیالیت غشا را کم میکند؛ این تغییر فیزیکی باعث تغییر آرایش کانالهای کلسیمی وابسته به ولتاژ و کانالهای مکانیکی حساس به کشش میشود.
در نتیجه این پدیده، جریان ناگهانی از یونهای کلسیم از آپوپلاست به درون سیتوپلاسم فوران میکند که به آن “موج کلسیم” (Calcium Signature) میگویند. این افزایش سریع کلسیم سیتوزولی نه تنها سمی نیست، بلکه پیام حیاتبخش آغاز تطابق با سرما است. پروتئینهای حسگر کلسیم نظیر کالمودولین (Calmodulin) و پروتئین کینازهای وابسته به کلسیم (CDPKs) با این یون اشباع میشوند. در ادامه، این کینازها فاکتورهای رونویسی هسته سلول (به ویژه خانواده ژنهای CBF/DREB) را فسفریله میکنند. محصول فعالسازی این ژنها سنتز پروتئینهای محافظتی غشا، از جمله دهیدرینها و آنتیاکسیدانهای آنزیمی است که رادیکالهای آزاد اکسیژن (ROS) حاصل از استرس سرما را نابود میکنند.
سینرژی و آنتاگونیسم کاتیونی: بالانس دقیق کلسیم و پتاسیم
یک خطای فاحش در برنامهریزی کودی پاییزه باغات، تمرکز تکبعدی بر پتاسیم است. شما بارها شنیدهاید که پتاسیم عنصر مقاومت است؛ اما آیا میدانستید ترزیق افراطی پتاسیم بدون حضور کلسیم کافی عملاً درخت را آسیبپذیرتر میکند؟
ریشه این تضاد در پدیدهای به نام تضاد جذبی کاتیونها نهفته است. در غشای سلولهای ریشه، پمپها و حاملهای یونی بر سر جذب کاتیونهای تکظرفیتی و دوظرفیتی رقابت میکنند. پتاسیم اضافه مانع از بارگیری طبیعی کلسیم به آوندهای چوبی میشود. در نبود کلسیم، پتاسیم سلولها را وادار به تورژسانس و رقیق کردن شیره سلولی کرده، دیوارهها به دلیل عدم تشکیل پکتات کلسیم شکننده باقی میمانند و نشت غشا در مواجهه با اولین یخبندان به اوج میرسد. به زبان مهندسی، پتاسیم ضریب ضد یخ سیال داخل بافت را بالا میبرد و کلسیم لولهها و مخازن این سیال را از خطر ترکیدگی مکانیکی مصون میدارد.
مقایسه فیزیولوژیک عملکرد کلسیم و پتاسیم در مواجهه با سرما
| مولفه بیولوژیک | پتاسیم (K+) | کلسیم (Ca^(2+)) | اثر همافزا در بالانس دو عنصر |
|---|---|---|---|
| محل استقرار غالب | سیمپلاست (سیتوزول و واکوئل) | آپوپلاست (دیواره سلولی و لایه بیرونی غشا) | محافظت سراسری از بیرون تا عمق سلول |
| مکانیسم مقابله با سرما | شیمیایی-اسمزی (تغییر نقطه انجماد) | مکانیکی-ساختاری و ترارسانی پیام | مهار شوک ترمودینامیکی و پارگی غشا |
| هدایت جریان آب | تنظیم باز و بسته شدن منافذ هیدرولیکی | مهار بازگشت کنترلنشده آب و حفظ آکواپورینها | آبگیری تدریجی و بیخطر بدون خشکیدگی برگشتناپذیر |
| تأثیر بر ساختار غشا | تنظیم فعالیت پمپهای پیوسته غشا | حفظ یکپارچگی فسفولیپیدها و مهار تغییر فاز | به حداقل رسیدن درصد نشت الکترولیتها |
| پیامد کمبود در تنش | انجماد سریع آب در منفی ۲ درجه سانتیگراد | لهشدگی بافت و پاره شدن غشا با کمترین یخ | شکست سریع تحمل بافت چوبی حتی در سرمای ملایم |
- ۱
نفوذپذیری غشا چگونه مانع از مرگ سلولی انجماد سیمپلاستی میشود؟
غشای سلولی به کمک کانالهای پروتئینی عبور آب (آکواپورینها) در حضور پایداری کلسیمی، به آب درون سلول اجازه میدهد تا پیش از انجماد سیتوزول، به سمت فضای بیرونی (آپوپلاست) فرار کند. با این کار، غلظت مواد محلول در سیتوپلاسم فوراً بالا رفته، پدیده فوقسرد شدن تقویت میگردد و کریستال یخی در سیتوزول امکان جوانهزنی پیدا نمیکند. - ۲
پتاسیم از چه مسیری نقطه انجماد را به تاخیر میاندازد؟
پتاسیم مستقیماً ذرات فعال اسمزی درون واکوئل را افزایش میدهد. همزمان، با تحریک کاتالیتیک آنزیمهای گلیکولیتیک و آمیلازها، نشاستههای نامحلول را به مولکولهای متعدد قندهای الیگومری محلول تبدیل میکند که طبق قانون افت نقطه انجماد، آستانه دمایی تشکیل کریستال یخ را چند درجه به زیر صفر منتقل مینماید. - ۳
پیوند کلسیم با پکتین دیواره دقیقاً چگونه مانع پارگی سلول میشود؟
اتصالات متقاطع Ca^(2+) با گروههای کربوکسیل اسید پکتیک، هیدروژل بسیار مقاومی به نام پکتات کلسیم ایجاد میکند. این ژل صلب، استحکام ساختاری دیواره را در برابر استرسهای مکانیکی ناشی از رشد زاویهدار و خنجری کریستالهای یخ در فضای بینسلولی تضمین کرده و مانع خرد شدن سلولها میشود. - ۴
ریشه تداخل و لزوم تنظیم نسبت K+/Ca^(2+) در اواخر فصل چیست؟
نسبت بالای پتاسیم به کلسیم در انتهای تابستان موجب جذب ترجیحی پتاسیم، اتساع بافتی و توقف انتقال کلسیم میشود. کلسیم فقط از مسیر تعرق آپوپلاستی حرکت میکند که با خنک شدن هوا این مسیر کند میشود؛ پس بدون مداخله هوایی، بافتها دچار کمبود موضعی کلسیم شده و دیوارهها در زمان افت دما تاب مقاومت در برابر یخ را نخواهند داشت. - ۵
پنجره زمانی فنولوژیک بیخطر پس از برداشت کدام است؟
ایدهآلترین پنجره زمانی، بلافاصله پس از برداشت محصول تا زمانی است که حداقل ۵۰ تا ۷۰ درصد برگها همچنان سبز، فعال و واجد فتوسنتز هستند. پاشش یا مصرف خاکی پس از زرد شدن کامل یا ریزش برگها عملاً اتلاف منبع است زیرا مسیرهای انتقالی گیاه مسدود شدهاند؛ از سویی دیگر، استفاده در اواخر تابستان زمانی که میوه روی درخت است میتواند بر پارامترهای تجاری میوه اثرات جانبی بگذارد.
پروتکلهای میدانی و تکنیکهای تغذیه پس از برداشت درختان
درک پدیدههای سلولی بدون داشتن نقشه راه عملیاتی در مزرعه بیارزش است. مدیریت تغذیه پاییزه با هدف مقاومت به سرما نیازمند تغییر نگرش در فرمولاسیونها و مسیرهای مصرف است.
توقف نیتروژن و مدیریت کاتیونی خاک
یکی از بزرگترین خطاهای مدیریتی در باغات، تزریق کودهای حاوی نیتروژن بالا در اواخر تابستان و اوایل پاییز است. نیتروژن با القای بیوسنتز اسیدهای آمینه و تحریک تقسیم سلولی، فرآیند چوبی شدن بافتها (Lignification) را به تعویق انداخته و با ایجاد بافتهای متورم، نازک و پرآب، شاخسارهها را در برابر اولین سرمای ناگهانی پاییز به شدت آسیبپذیر میکند.
در برنامه تغذیه پس از برداشت، تمرکز خاکی باید تماماً بر سولفات پتاسیم و ترکیبات کلسیمی با حلالیت اصلاحشده باشد. یون پتاسیم در خاکهای رسی و لومی سرعت تثبیت بالایی دارد؛ از این رو استفاده از منابع سولوپتاس (سولفات پتاسیم کاملاً محلول) در مراحل آب آخر پیش از ورود به خزان، سیستم ریشه را شارژ میکند بدون اینکه شوک رشدی جدیدی به گیاه تحمیل شود.
محلولپاشی اواخر فصل: غلبه بر محدودیتهای تعرق بافت چوبی
همانطور که تشریح شد، یون کلسیم در گیاه آپوپلاستی حرکت میکند؛ یعنی به شدت به جریان تعرق آوند چوبی وابسته است. در ماههای پاییز با کاهش زاویه تابش خورشید و خنک شدن هوا، نرخ تعرق روزنه برگها و شاخهها به شدت افت میکند. درخت دیگر توان مکش کلسیم از خاک به سمت جوانهها و بافت چوبی یکساله (حساسترین اندام به سرمای زمستان) را ندارد.
اینجاست که محلولپاشی برگی ضرورت پیدا میکند. پاشش برگی ترکیبات استاندارد کلسیم با غلظت ۲ تا ۳ در هزار همراه با اسید بوریک یا اتانولآمین بور، کلسیم را از طریق بافت کوتیکول و عدسکها مستقیماً وارد آوند آبکش و پارانشیم جوانهها میسازد. عنصر بور در این میان کاتالیزور تثبیت کلسیم است؛ بور با ساخت کمپلکسهای استری با قندها در دیواره سلولی، جایگاههای پیوندی کلسیم را در تیغه میانی افزایش داده و سرعت جابهجایی آن را دوچندان میکند.
انتخاب فرمولاسیون: فسفیت پتاسیم، سیلیکات پتاسیم یا کلرید کلسیم؟
- فسفیت پتاسیم (K_3 PO_3): یون فسفیت تحرک فوقالعاده بالایی در هر دو آوند چوبی و آبکشی دارد. فسفیت نه تنها پتاسیم را با سرعت وارد سیتوزول میکند، بلکه با تحریک ترشح فیتوالکسینها، سیستم ایمنی گیاه را در برابر پوسیدگیهای طوقه و زخمهای پس از سرمای پاییزه مقاوم میسازد.
- سیلیکات پتاسیم: سیلیس با جایگیری در فضای بینسلولی لایه اپیدرم، یک لایه حفاظتی مضاعف فیزیکی میسازد که همراه با پتاسیم، عایق حرارتی سلولها در برابر یخزدگی سطحی خواهد بود.
- کلرید کلسیم در مقابل کلسیم کلاته: در محلولپاشی پس از برداشت برگها، استفاده از کلرید کلسیم با گریدهای کشاورزی به دلیل داشتن درصد بالایی از کلسیم موثر است، مشروط بر آنکه تنش شوری خاک در باغ حاکم نباشد. برای درختان حساس به کلر (نظیر هستهدارها و پسته)، کلاتهای کلسیم با پایه اسیدهای آمینه یا کربوکسیلیک ارجحیت قطعی دارند.
وضعیت چوبیشدگی ساقه (Lignification Status)
بررسی ماکروسکوپیک و میکروسکوپیک مقطع شاخههای سال جاری نشان میدهد که آیا رنگ پوست از سبز به قهوهای عمیق تغییر یافته و آوندهای چوبی متراکم شدهاند یا خیر. بافت نرم و اسفنجی نشانه کمبود فسفر و کلسیم و مازاد ازت است، در حالی که بافت ارتجاعی، ترد و کاملاً خشبی تاییدکننده پایداری کلسیم در پکتینهای دیواره است.
جمعبندی قطعی و فنی
مقاومسازی درختان به سرمازدگی پاییزه و زمستانه فرآیندی تصادفی یا مبتنی بر معجزههای شیمیایی تجاری زودبازده نیست؛ بلکه حاصل مهندسی دقیق ساختارهای سلولی گیاه است. پتاسیم با به دست گرفتن کنترل پتانسیل اسمزی سیتوزول، آب سلول را فوقسرد کرده و انجماد درونسلولی را به تعویق میاندازد، در حالی که کلسیم با بافتن شبکه پکتات در دیواره و سدسازی بر روی دو لایه فسفولیپیدی غشا، جلوی لهشدگی فیزیکی و فروپاشی فیزیولوژیک سلول را سد میکند.
برای دستیابی به حداکثر تابآوری باغات میوه:
- ۱. بلافاصله پس از اتمام چیدن بار، مصرف هرگونه ازت خاک متوقف شود.
- ۲. با حفظ سبزی برگها، تغذیه تلفیقی کلسیم و بور از طریق شاخساره صورت پذیرد.
- ۳. شارژ پتاسیمی خاک با ترکیبات خالص سولفاته و محلولپاشی هدفمند فسفیت یا سیلیکات پتاسیم نهایی گردد.
این رژیم متوازن، ساختار آوندی درخت را به یک سامانه زنده و نفوذناپذیر در برابر سختترین موجهای سرمای قارهای تبدیل میکند.
پرسشهای متداول (FAQ)
سؤال ۱: آیا محلولپاشی کلسیم پس از برداشت موجب ریزش زودهنگام برگها میشود؟
خیر، کلسیم عنصری ضدپیری (Anti-senescence) است که با پایداری دیواره و غشا مانع از فعال شدن زودرس اتیلن و تشکیل لایه جداکننده در دمبرگ میشود؛ برعکس، به حفظ فتوسنتز پاییزه کمک میکند.
سؤال ۲: بهترین زمان مصرف سولفات پتاسیم در پاییز برای کنترل سرمازدگی چه موقع است؟
بهترین زمان، همراه با آخرین آبیاری سنگین پیش از خزان کامل (مهر تا اواسط آبان بسته به اقلیم) است تا ریشهها قبل از افت دمای خاک به زیر ۱۰ درجه، یونهای پتاسیم را جذب و در بافتهای چوبی انباشت کنند.
سؤال ۳: چرا نباید کلسیم و پتاسیم را با هم در تانک سمپاش مخلوط کرد؟
به دلیل تداخل کاتیونی و احتمال ناسازگاری نمکهای کودی (به ویژه سولفاتها و فسفاتها با کلسیم) که منجر به تشکیل رسوبات گچی غیرقابل جذب نظیر سولفات کلسیم در تانک و انسداد نازلها و مسمومیت برگ میشود.
سؤال ۴: آیا فسفیت پتاسیم جایگزین کامل سولفات پتاسیم خاکی است؟
خیر؛ فسفیت پتاسیم در محلولپاشی به سرعت جذب شده و سیستم ایمنی و پتانسیل اسمزی برگها و جوانهها را تجهیز میکند، اما حجم پتاسیم مورد نیاز اسکلت درخت باید حتماً از طریق مصرف خاکی سولفات پتاسیم تامین گردد.
سؤال ۵: اضافه کردن بور به کلسیم در محلولپاشی پاییزه چه فایدهای دارد؟
بور حامل همافزای کلسیم است؛ بور با پیوند به مولکولهای دیواره سلولی، نقاط اتصال کلسیم را باز نگه داشته و جابهجایی کند کلسیم را در بافت فاقد تعرق پاییزه به شدت سرعت میبخشد.
سوالات متداول
نقش بالانس کلسیم و پتاسیم در جلوگیری از سرمازدگی درختان چیست؟
کلسیم با تشکیل پکتات کلسیم در دیواره سلولی و پایدارسازی غشای پلاسمایی، مانع تخریب مکانیکی بافتها توسط بلورهای یخ میشود. همزمان، پتاسیم با کاهش پتانسیل اسمزی سیتوزول و هیدرولیز نشاسته به قندهای محلول، نقطه انجماد شیره سلولی را پایین آورده و از یخزدگی مخرب درونسلولی ممانعت میکند.
بهترین زمان و روش تغذیه کلسیم و پتاسیم پس از برداشت چیست؟
بهترین زمان بلافاصله پس از برداشت و تا پیش از زردی ۵۰ درصد برگها است. به دلیل کاهش تعرق پاییزی، کلسیم همراه با بور باید به صورت محلولپاشی برگی مصرف شود و پتاسیم از طریق ریشه (سولوپتاس در آب آخر) و محلولپاشی برگی با فسفیت یا سیلیکات پتاسیم تامین گردد.
چرا مصرف کود ازته در اواخر تابستان و پاییز مقاومت به سرما را کاهش میدهد؟
کودهای نیتروژنه در پاییز با تحریک رشد رویشی جدید و تعویق فرآیند چوبیشدن (لیگنیفیکاسیون)، بافتهای گیاهی را ترد، متورم و پرآب نگه میدارند. این سلولهای نازک فاقد ذخایر کافی قند و پیوندهای مستحکم کلسیمی بوده و با اولین یخبندان ناگهانی دچار پارگی و زوال کامل میشوند.
مشاوره تخصصی با دکتر کالا تک
ورود به سامانه هوشمند کالاتک